Bacillus cereus est une bactérie ubiquitaire que l’on retrouve notamment dans les sols, les sédiments marins, l’eau, les aliments [1]. À la faveur de différents stress environnementaux (carence nutritive, compétition microbienne), elle est en capacité de former du biofilm, et de former des spores qui sont résistantes à la chaleur, aux UV, à la déshydratation et aux pH extrêmes, participant ainsi à sa dissémination dans l’environnement hospitalier. Connu depuis longtemps pour son rôle dans les toxi-infections alimentaires collectives (TIAC), ce micro-organisme est aujourd’hui reconnu comme un pathogène opportuniste responsable d’infections sévères, notamment chez les immunodéprimés et chez les nouveau-nés prématurés (NNP).
Caractéristiques microbiologiques
Caractères culturaux
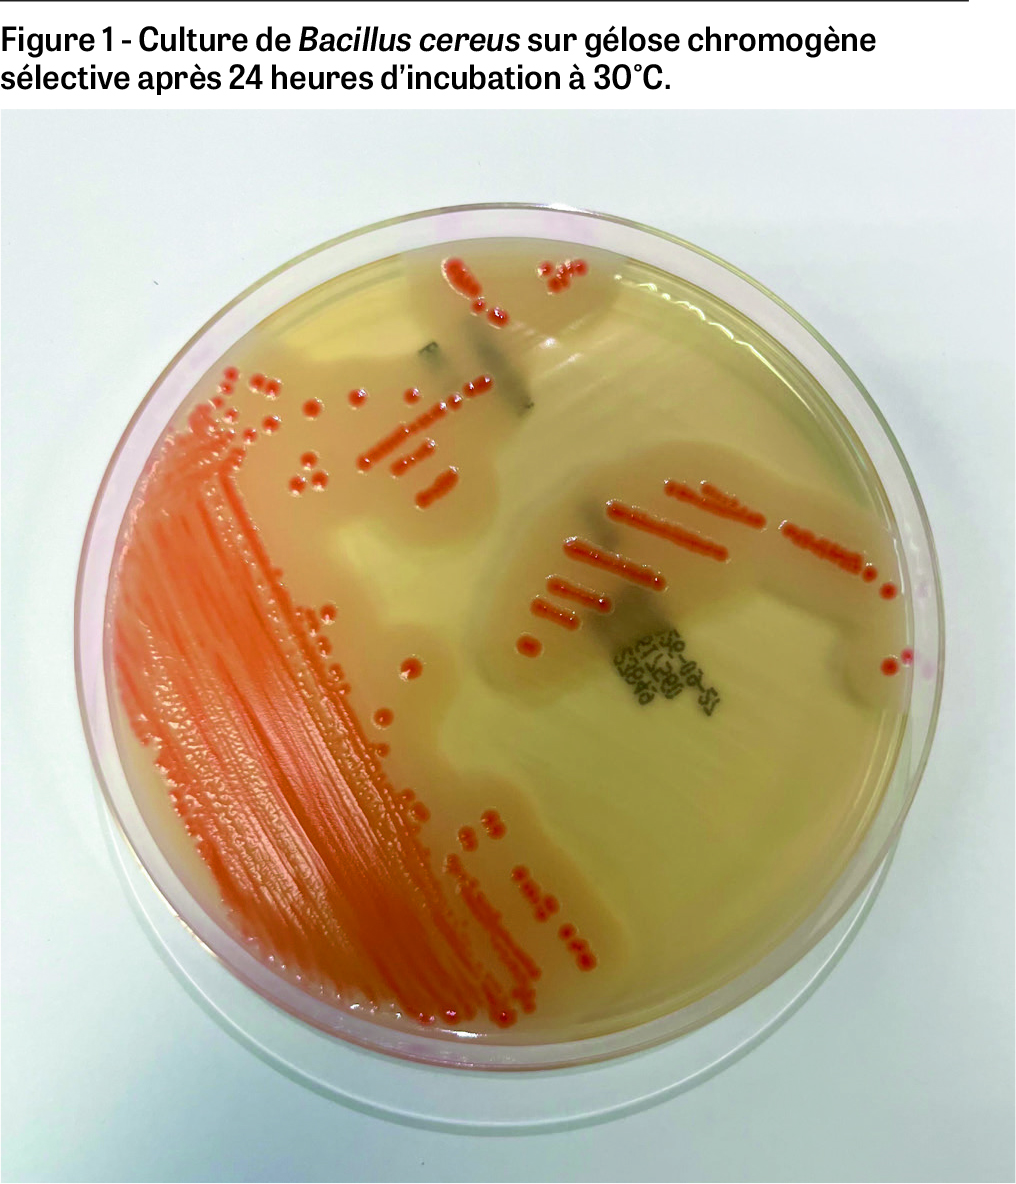
Bacille à Gram positif, mobile grâce à une ciliature péritriche, aérobie ou anaérobie facultatif non exigeant, B. cereus a une croissance rapide à 30 ou 37°C sur milieux conventionnels. Sur gélose au sang, les colonies sont grandes (3-5 mm de diamètre), mates et plates, avec des bords irréguliers. Elles présentent une hémolyse de type bêta due à la production d’hémolysine BL. Sur les milieux sélectifs et chromogènes contenant notamment de l’émulsion de jaune d’œuf, la bactérie produit une phospholipase C qui hydrolyse la lécithine, formant un halo opaque autour des colonies (Figure 1). Ces caractéristiques microbiologiques permettent une détection aisée dans les prélèvements cliniques et environnementaux.
Facteurs de virulence
B. cereus dispose d’un arsenal de facteurs de virulence, parmi lesquels des entérotoxines porogènes, le céréulide, ou encore des hémolysines. Ces facteurs de virulence sont décrits ci-après.
Entérotoxines
Les entérotoxines sécrétées par B. cereus sont des toxines dites porogènes : l’hémolysine BL (HBL) et l’entérotoxine non hémolytique (NHE) composées chacune de 3 sous-unités, ainsi qu’une toxine à un seul composant, la cytotoxine K (CytK, également connue sous le nom d’hémolysine IV). Ces toxines sont produites et sécrétées principalement pendant la phase exponentielle de la croissance bactérienne. Elles endommagent les cellules épithéliales intestinales en formant des pores, ce qui conduit à un efflux d’ions K+ activant plus ou moins rapidement selon la toxine une activation de l’inflammasome NRLP3 conduisant à une lyse osmotique des cellules par pyroptose et, par conséquent, à une diarrhée [2].
Céréulide
Le céréulide est un dodécadépsipeptide cyclique, apparenté à un ionophore de potassium, perturbant le potentiel membranaire des cellules et favorisant la lyse mitochondriale. L’effet émétisant de cette toxine est dû à l’activation des récepteurs 5HT3 (ou récepteurs 5-hydroxytryptamine de type 3) à la sérotonine des cellules intestinales. Le céréulide est sécrété principalement pendant la phase stationnaire de la croissance bactérienne. Thermostable, résistant à la protéolyse et aux milieux acides, il est retrouvé dans des aliments riches en amidon (riz, pâtes) et des produits laitiers [3,4].
Hémolysines
L’hémolyse observée chez B. cereus peut être induite par HBL, NHE et CytK grâce à leur capacité à former des pores au niveau des érythrocytes. B. cereus exprime également l’hémolysine I (ou céréolysine O), l’hémolysine II et l’hémolysine III, dont le mécanisme de formation des pores reste encore mal connu [2]. De plus, certains travaux ont montré que l’action combinée de la phospholipase C et d’une sphingomyélinase peut conduire également à une hémolyse [5].
Gènes de résistance
En dehors de B. anthracis, B. cereus sensu lato est fréquemment résistant aux pénicillines et aux céphalosporines en produisant jusqu’à trois β-lactamases chromosomiques (bla1, bla2 et bla3). En revanche, il reste sensible aux carbapénèmes. L’expression des β-lactamases chromosomiques varie considérablement entre les espèces du groupe Bacillus cereus [6].
La bactérie est également sensible aux glycopeptides, aux fluoroquinolones, au linézolide et aux aminoglycosides. La vancomycine, parfois associée à un aminoside reste donc le traitement de première intention [1].
Bacillus cereus sensu lato, fruit d’une taxonomie complexe
De l’ère pré-séquençage au séquençage du génome complet
Avant 1998, le groupe Bacillus cereus (Bc) ou Bacillus cereus sensu lato ne comprenait que quatre espèces différenciées sur des critères phénotypiques :
- Bacillus anthracis, immobile et encapsulé, agent de l’anthrax,
- Bacillus cereus sensu stricto, organisme éponyme du complexe d’espèce dont le nom vient du latin cera (cire) en référence à l’aspect cireux des colonies,
- Bacillus thuringiensis, producteur de cristaux protéiques utilisés comme bio-insecticide,
- Bacillus mycoïdes, reconnaissable à l’ aspect caractéristique de ses colonies en rhizoïdes.
B. pseudomycoides et B. weihenstephanensis ont ensuite été décrits, et les techniques génétiques ont offert un pouvoir de discrimination supérieur aux tests biochimiques et microbiologiques pour lequels on sait qu’il existe des variations intra-espèces et inter-espèces [7], et qui étaient les principales méthodes utilisées pour établir ces dernières comme de nouvelles espèces.
Avant l’adoption de méthodes de typage à un seul locus ou multi-loci (SLST1 et MLST2 respectivement), des techniques telles que le RAPD3 ou l’électrophorèse en champ pulsé (PFGE) ont joué un rôle déterminant dans la différenciation des membres du groupe Bc. Parmi les approches SLST, le gène de ménage de la pantoate-β-alanine ligase (panC) est devenu un locus cible populaire en 2008, lorsque Guinebretière et al. ont défini sept groupes phylogénétiques (I à VII) au sein du groupe Bc [8]. Cette classification a été établie à partir des données phylogénétiques du séquençage partiel de ce gène chez 425 souches, couplées à leur plage de température de croissance spécifique (psychrotrophe, mésophile et thermophile). Elle est encore utilisée pour caractériser des souches notamment dans un contexte épidémique [9,10]. Cependant, parmi les approches MLST qui reposent sur plusieurs gènes de ménage, le schéma MLST à sept gènes PubMLST à partir des loci glp, gmk, ilv, pta, pur, pyc et tpi demeure la base de caractérisation des espèces.
Depuis l’avènement du séquençage nouvelle génération (NGS), le groupe s’est enrichi de nouvelles espèces et ne cesse d’évoluer. En 2022, près d’une vingtaine d’espèces ont ainsi été décrites comme phylogénétiquement proches, telles que B. mobilis ou B. paranthracis [1,11].
Implication pour l’identification au laboratoire
En routine, malgré l’ajout progressif de différentes espèces du groupe dans les bases d’identification par MALDI-TOF, il semble plus prudent de rendre le résultat sous la forme « B. cereus sensu lato » ou « B. cereus group », si l’on accepte l’anglicisme. De plus, les bases standard ne couvrent pas la totalité des espèces, et notamment B. anthracis (Encadré 1, [12-13]).
ENCADRÉ 1
Bacillus anthracis, une identification sous haute surveillance.
B. anthracis est l’agent étiologique de l’anthrax ou maladie du charbon, maladie enzootique et zoonotique de répartition mondiale, septicémique, hémorragique et très souvent mortelle, qui touche principalement les mammifères herbivores sauvages et domestiques.
Chez l’être humain, la maladie est présente sous 3 formes liées aux voies de transmission des spores :
• cutanée en cas de souillure de plaies ou à la faveur d’effraction cutanée lors de la manipulation de carcasses, ou de produits (peaux, cornes, os) issus d’animaux infectés,
• digestive, consécutive à l’ingestion de viande contaminée,
• respiratoire, par inhalation de spores, et considérée comme la forme la plus grave.
Sans traitement antibiotique, la dissémination septicémique est systématiquement mortelle.
B. anthracis peut être détourné à des fins d’arme biologique ou pour le bioterrorisme. En 2001 aux États-Unis, des attaques par lettres contenant des spores mêlées à de la poudre, l’ont démontré avec 22 cas confirmés (11 cutanés, 11 par inhalation) dont 5 décès, illustrant le besoin urgent d’améliorer les méthodes de détection et d’identification précoces [12].
Comme évoquée précédemment, la bactérie possède des caractères phénotypiques particuliers : immobilité, absence d’hémolyse, sensibilité à la pénicilline. Bacillus anthracis possède par ailleurs deux plasmides essentiels à sa virulence : pXO1 (182 kb), qui code la synthèse de la toxine, et pXO2 (96 kb), qui code la synthèse des éléments de la capsule. La présence des deux plasmides est indispensable pour identifier les souches pathogènes, la perte de l’un ou l’autre atténue fortement sa virulence, la perte des deux la supprime totalement. Son identification peut donc reposer sur ces critères phénotypiques et sur des méthodes moléculaires, notamment la PCR ciblant les gènes chromosomiques et plasmidiques. Néanmoins, l’identification peut être relativement longue (>24 heures), et certaines souches peuvent présenter des caractéristiques atypiques complexifiant de fait davantage le diagnostic [12].
Quant au MALDI-TOF qui allie rapidité, coût modéré et fiabilité diagnostique, la bactérie n’est référencée que dans les bases de spectres dédiées au bioterrorisme. Ainsi, une souche de B. cereus sensu stricto pourrait être identifiée à tort comme anthracis si cette seule base est utilisée, en effet certains biomarqueurs d’identification manquent de spécificité, ne permettant pas une distinction fiable par espèce. Il est donc impératif de combiner les deux bases pour valider l’identification [13].
Toutefois, la situation se complique encore en raison du fait que B. cereus sensu lato peut acquérir les deux plasmides pXO1 et pXO2 par transfert horizontal, donnant naissance à des souches anthracis-like appelées B. cereus biovar anthracis. Ces souches, capables de provoquer d’authentiques cas d’anthrax chez l’animal et l’humain, sont également classées comme agent de bioterrorisme. Pourtant leur identification reste imparfaite, avec des lacunes persistantes.
En définitive, seul le séquençage génomique permet d’identifier les espèces du groupe, notamment pour établir un lien entre espèce et tableau clinique, et en particulier pour documenter précisément les cas d’infection.
Pouvoir pathogène
Infections digestives
B. cereus est principalement connu pour être responsable d’infections gastro-intestinales, parfois appelées « syndrome du riz frit », en référence au riz laissé à température ambiante pendant une période prolongé puis frit, permettant le développement de la bactérie et la production de toxine [14]. Dans le rapport de surveillance des TIAC 2023 publié cette année par Santé publique France, Bacillus cereus demeure l’un des pathogènes les plus fréquemment suspectés sur la base des informations épidémiologiques et cliniques, mais sans avoir été nécessairement confirmé sur le plan microbiologique, contrairement aux Salmonella [15]. Bacillus cereus peut en effet être à l’origine de deux tableaux cliniques principaux.
Les cas d’intoxination alimentaire se manifestent suite à l’ingestion d’une toxine émétique alimentaire, le céréulide. Cette situation clinique a été très médiatisée en 2026 car la toxine était présente dans une huile riche en acide arachidonique entrant dans la composition de laits infantiles. L’aliment contient donc la toxine déjà formée, qui peut être présente même en l’absence de bactéries vivantes, et le réchauffage de l’aliment ne suffit pas toujours à éliminer le risque, le céréulide étant thermostable comme évoqué précédemment. Les vomissements apparaissent rapidement après l’ingestion (30 minutes à 6 heures). Ces cas d’intoxination ne font pas l’objet d’un diagnostic biologique dans les prélèvements humains car les symptômes sont habituellement de courte durée. Les Bacillus incriminés sont des Bc du groupe phylogénétique III associés à des matrices amylacées (riz, pâtes, pommes de terre) mal conservées.
L’autre présentation clinique est la conséquence d’une intoxication par des aliments contenant des spores viables. En effet, les bactéries sont ingérées, se multiplient dans le tube digestif, et produisent des entérotoxines, notamment l’Hémolysine BL (Hbl), l’entérotoxine non hémolytique (Nhe) et la Cytotoxine K (CytK-1 et CytK-2) [16]. Les symptômes surviennent plus tardivement après la consommation de l’aliment contaminé (de 6 à 24 heures) et associent douleurs abdominales et diarrhées. Le diagnostic biologique de ces cas de toxi-infection repose essentiellement sur la recherche d’entérotoxines dans l’aliment contaminé, plutôt que dans les prélèvements humains. La bactérie peut toutefois être recherchée dans les selles (par test PCR ciblant les gènes de toxines, dans des laboratoires spécialisés).
Infections extra-digestives
Par ailleurs, B. cereus est associé à de nombreuses manifestations cliniques extra-digestives, qu’elles soient localisées ou invasives : abcès cérébraux, endophtalmies, pleuro-pneumopathies, infections ostéoarticulaires, bactériémies avec sepsis, méningites, etc. [2].
Les endophtalmies en sont un exemple frappant : principalement post-traumatiques, elles illustrent parfaitement tout l’arsenal de virulence du groupe Bc. En effet, les dégâts oculaires qu’elles provoquent sont plus sévères que ceux causés par des staphylocoques comme S. epidermidis ou S. aureus.
Les infections invasives à Bc dépendent étroitement du statut immunitaire du patient : chez les patients immunocompétents, elles restent rares et surviennent généralement en post-opératoire ou après des fractures ouvertes, souvent dans un contexte plurimicrobien. Elles sont beaucoup plus fréquentes chez les patients immunodéprimés, en particulier ceux atteints d’hémopathies malignes, qui présentent un risque accru de bactériémies [2,13], mais également chez les NNP. Ces infections ont par ailleurs un caractère saisonnier, avec une augmentation de leur incidence en été [17,18].
Concernant les mesures de prévention, celles-ci sont détaillées ci-après dans le contexte spécifique de la néonatologie. Cependant, la plupart de ces mesures peuvent être étendues aux autres secteurs de soins.
Le cas particulier des nouveau-nés prématurés
Infections invasives chez les NNP
Les NNP (nés à moins de 37 semaines d’aménorrhée) font partie des populations à haut risque d’infections invasives au groupe Bc. Trois facteurs principaux expliquent cette vulnérabilité : l’immaturité de leur système immunitaire, la présence de dispositifs invasifs et la durée prolongée de leur hospitalisation.
La revue de la littérature menée par Lotte et al. a révélé qu’elles étaient probablement sous-estimées, tout en étant en forte augmentation, et associées à une mortalité élevée, de l’ordre de 30% [1]. On peut donc raisonnablement s’interroger sur le fait que certaines espèces soient plus à même d’infecter ces jeunes patients, notamment si elles présentent des facteurs de virulence qui pourraient expliquer la gravité des cas.
ENCADRÉ 2
Quelle surveillance microbiologique environnementale en néonatologie ?
Les bactéries du groupe Bc, omniprésentes dans l’environnement hospitalier, ne provoquent que rarement des infections ou une colonisation chez les nouveau-nés prématurés. Ces cas surviennent lorsque plusieurs facteurs (liés à la bactérie, à l’hôte ou à l’environnement) s’alignent, conformément à la théorie de James Reason, plus connue sous le nom de modèle du fromage suisse.
Une surveillance environnementale ciblée sur Bacillus cereus dans un service de néonatologie permet de suivre la pression environnementale du groupe Bc et, in fine, d’adapter les mesures de prévention du risque infectieux. Parmi les méthodes disponibles, la technique par culture est privilégiée.
Le choix de la méthode de prélèvement repose sur deux critères principaux : sa performance analytique et le niveau d’expertise technique requis. Dans l’étude de Manin et al., plusieurs outils sont décrits :
• géloses contact : pour la surveillance annuelle postbionettoyage du service ;
• chiffonnettes de prélèvement : pour l’investigation environnementale autour des cas ;
• écouvillons : pour la surveillance ciblée du groupe Bc.
Les écouvillons, dont le liquide de transport contient un milieu neutralisant les désinfectants, associés à une culture de 24 heures à 30°C sur milieu chromogène sélectif, s’avèrent être la solution optimale pour cette surveillance [22].
Les prélèvements positifs permettent d’identifier les zones nécessitant un renforcement du bionettoyage. Cependant, l’interprétation la plus pertinente pourrait reposer sur le taux de positivité global des échantillons.
En s’inspirant du seuil de 30% utilisé pour les légionelles [23,24], il serait possible de définir un seuil critique (par exemple, 20%) au-delà duquel la pression environnementale liée à Bc deviendrait préoccupante. Ce seuil devra cependant s’appuyer sur un échantillonnage suffisamment large pour être fiable. Cela dit, cette stratégie s’est déjà appliquée à B. cereus : une équipe japonaise a établi des valeurs régionales et saisonnières de référence pour sa détection dans des échantillons cliniques, notamment en cas de bactériémies, qui pourraient servir de base comparative aux hôpitaux pour évaluer la nécessité d’une intervention en prévention du risque infectieux [11].
Pour répondre à ces questions et approfondir ces observations, une étude multicentrique, menée dans 14 services de réanimation de 12 villes françaises, a caractérisé les souches de Bc ayant infecté 40 NNP entre 2010 et 2022 [19]. Les résultats montrent des différences cliniques et microbiologiques marquées selon l’issue de l’infection : les patients décédés (n=15 ; 37,5%) présentaient plus fréquemment un sepsis d’installation rapide (p=0,004), ainsi que des atteintes neurologiques (p=0,0038) et circulatoires ; la répartition des espèces différait également de manière significative : Bacillus cereus sensu stricto était isolé chez 46% des NNP décédés avec une prépondérance des gènes de virulence de l’hémolysine BL et de sidérophores, contre 68% de Bacillus paranthracis chez les survivants (p<0,001) avec au sein de cette espèce la prédominance du gène codant le céréulide.
De manière globale, parmi les 40 souches isolées, sept espèces ont été identifiées. Une analyse du core genome MLST (n=1567 loci) a mis en évidence une grande diversité génétique avec néanmoins deux particularités notables. D’une part 11 souches de B. paranthracis ST26 ont été identifiées. Cette bactérie a d’ailleurs été impliquée dans une épidémie de TIAC en Chine [20]. D’autre part, il a été mis en évidence trois souches de B. mobilis ST992, très proches, et correspondant à trois patients d’un même établissement infectés à des périodes différentes (2016, 2017 et 2018). Cette dernière observation suggère la possibilité d’un réservoir environnemental.
Sources possibles d’infection
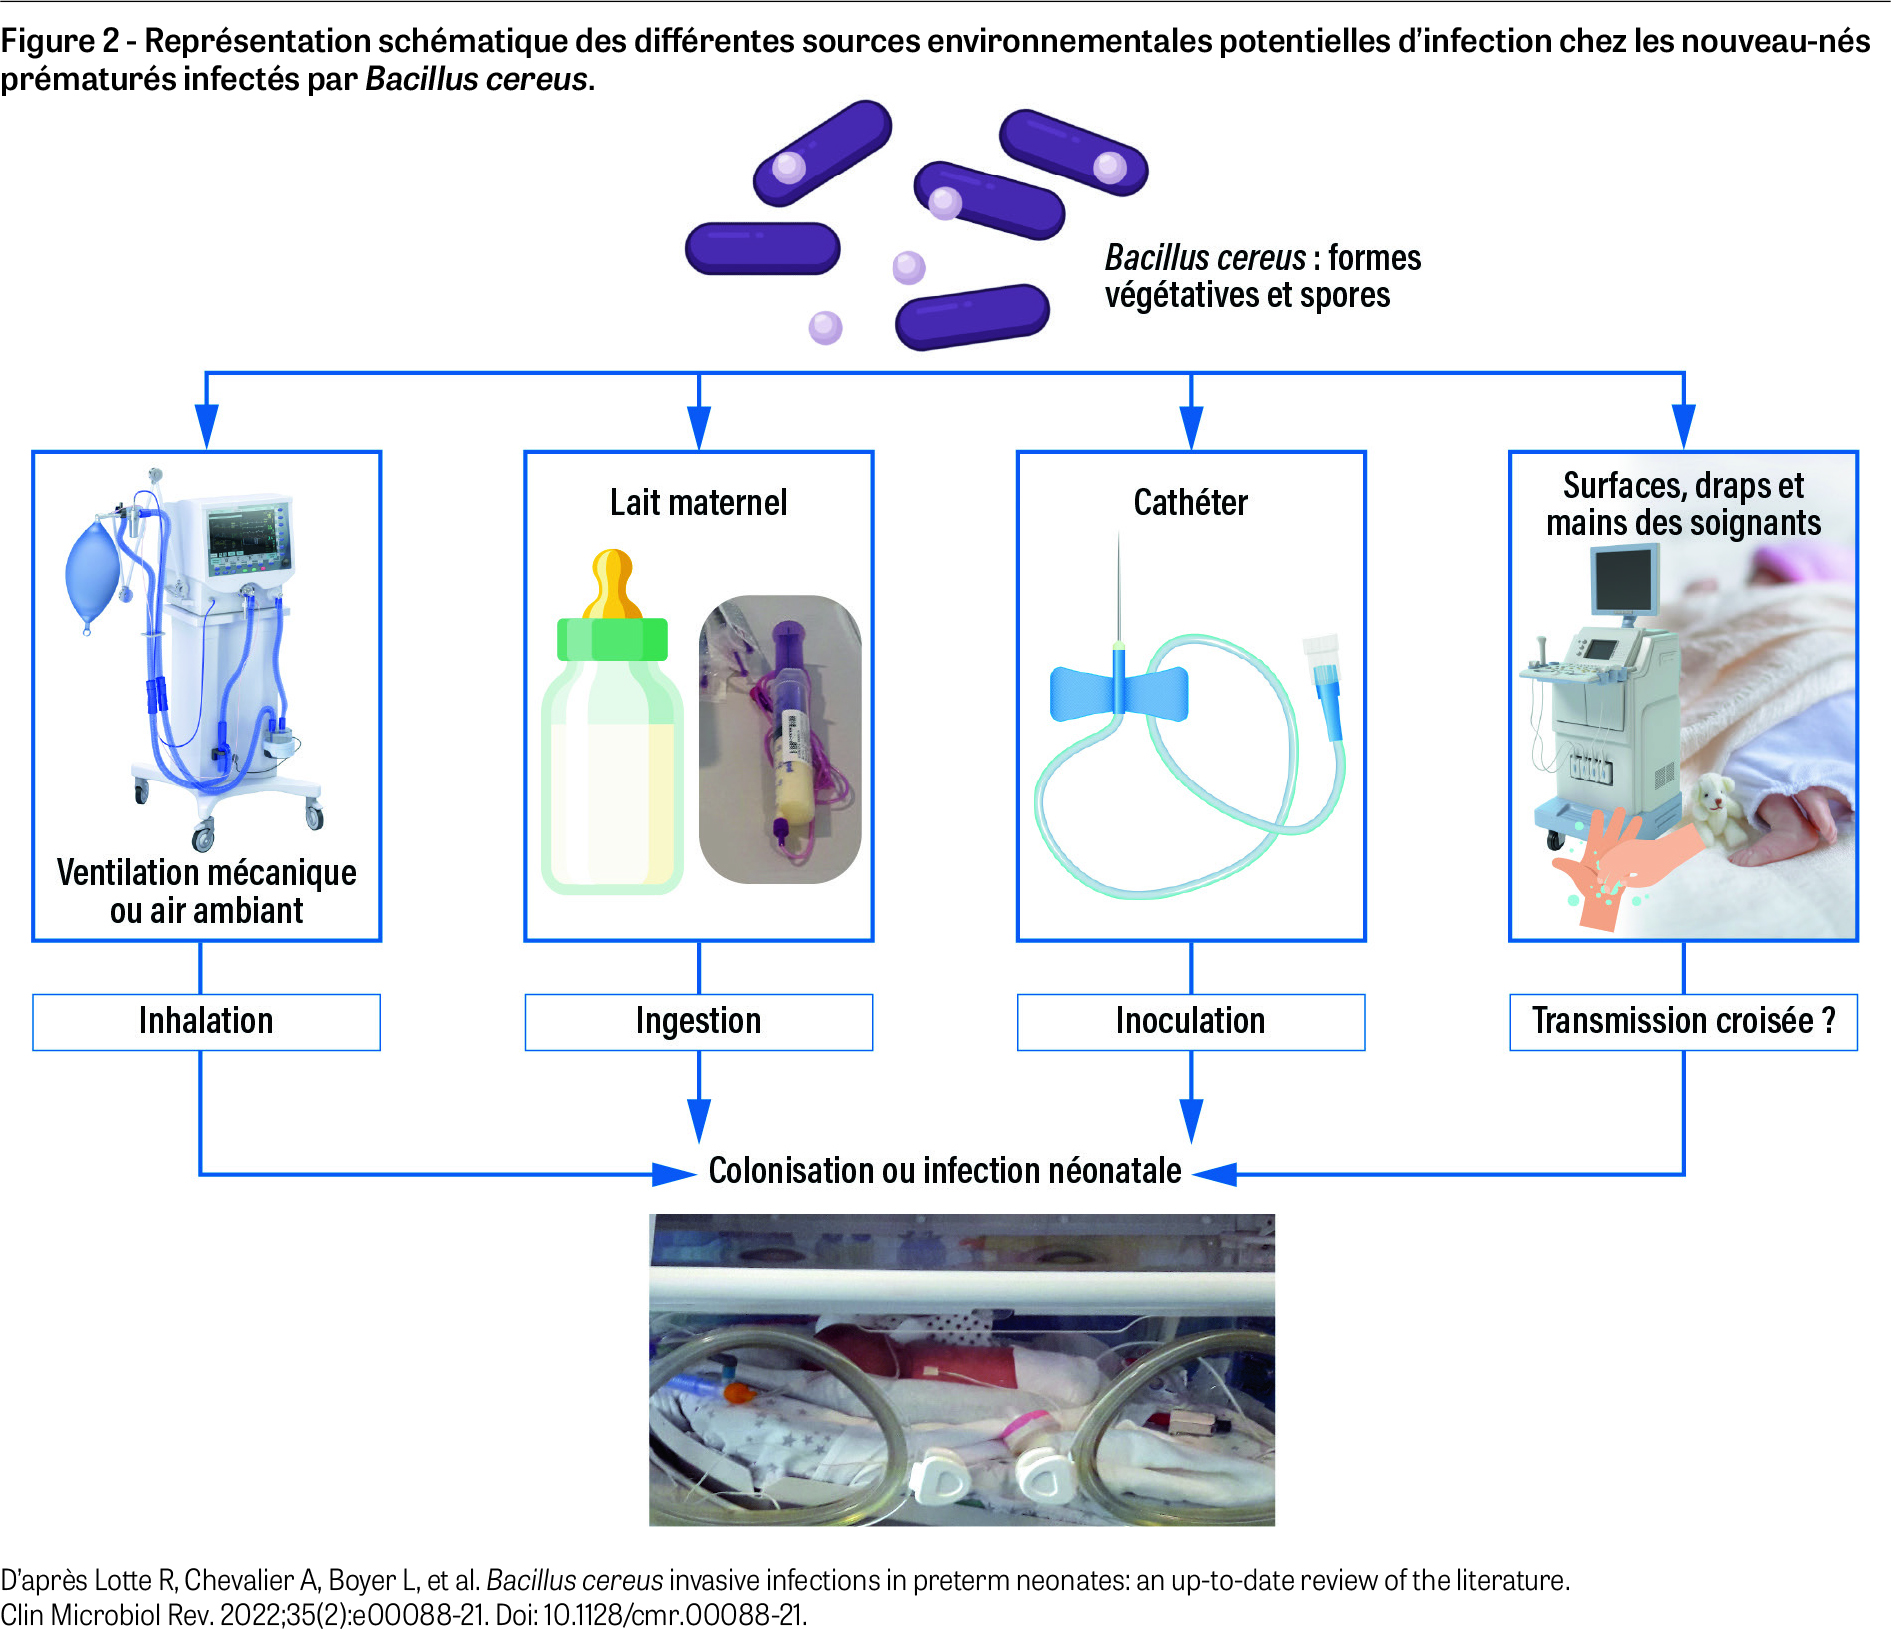
L’environnement hospitalier des services de néonatologie constitue un réservoir potentiel de Bacillus cereus sensu lato, avec de multiples sources de contamination : respirateurs, lait maternel, cathéters, linge, surfaces, etc.
Les modes de transmission le plus souvent suspectés (bien que pas toujours confirmés par typage génomique) incluent : l’inhalation, l’ingestion, l’inoculation de spores, ou encore la transmission croisée à partir de surfaces contaminées ou des mains du personnel (Figure 2).
Investigation de cas groupés et implémentation de mesures de prévention
L’identification des sources d’infection environnementales est cruciale pour maîtriser les épidémies. Pourtant, deux investigations menées à Marseille et Lyon ont illustré toute la complexité de cet exercice en raison du caractère polyclonal des cas décrits et des liens de clonalité établis entre souches cliniques et environnementales [21,22]. L’enquête doit néanmoins cibler dès l’alerte ces six sources possibles : cathéters, équipements médicaux, lait maternel et nutrition parentérale, contamination aérienne (poussières, travaux), surfaces et mains du personnel.
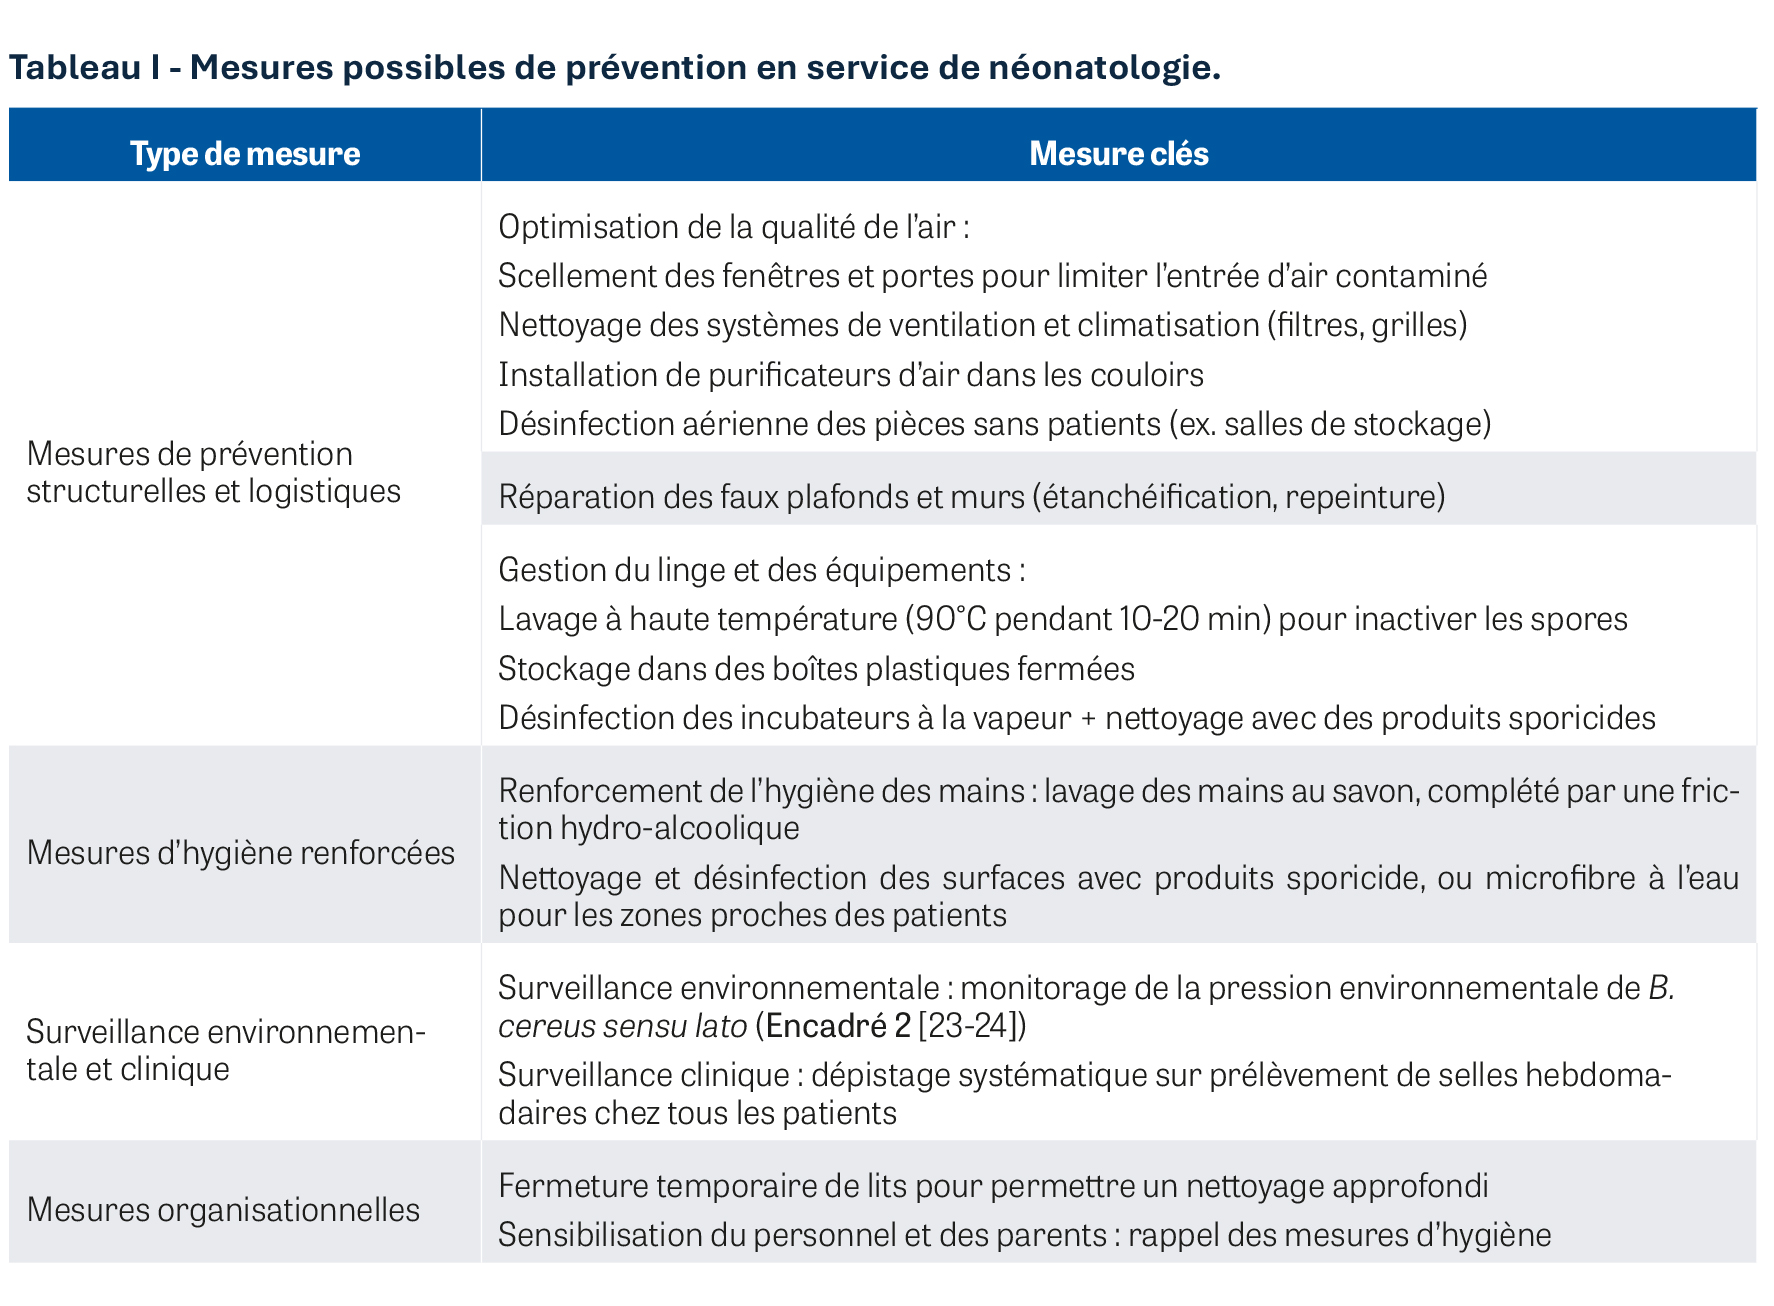
En matière de prévention, des mesures préventives ou correctives de plusieurs types peuvent être appliquées : renforcement de l’hygiène, surveillance environnementale et clinique, mesures organisationnelles, structurelles et logistiques (Tableau I).
Conclusion
Bacillus cereus se révèle être bien plus qu’un simple agent de toxi-infections alimentaires. D’une part, si les avancées en séquençage génomique ont permis de mieux comprendre la diversité du groupe Bc, identifiant de nouvelles espèces, associées à des profils de virulence distincts, son identification en routine reste imprécise. D’autre part, grâce à sa capacité à former des spores, la bactérie qui persiste dans les environnements hospitaliers, peut provoquer des infections invasives graves, notamment chez les nouveau-nés prématurés, avec une mortalité préoccupante. Les mécanismes de transmission, souvent multifactoriels, et la complexité des investigations épidémiologiques rappellent que la lutte contre ce pathogène exige une approche multidisciplinaire impliquant les ressources cliniques, microbiologiques et de prévention du risque infectieux.
1- Single locus strain typing.
2- Multi locus strain typing.
3- Random amplified polymorphic DNA ou amplification aléatoire d’ADN polymorphe.